

5. Эмбриологические доказательства
1. Свидетельства эволюции в индивидуальном развитии организмов
Однажды после публичной лекции великого биолога Джона Холдейна некая дама заявила: «Не могу себе представить, чтобы из одноклеточного существа развился такой сложнейший организм, как человеческий, состоящий из триллионов клеток, даже если у него были на это миллиарды лет». На что Холдейн ответил: «Мадам, вы сами это проделали. И у вас ушло на это всего девять месяцев».
Многоклеточные организмы развиваются из единственной клетки — оплодотворенного яйца. В геноме многоклеточных нет "чертежа" взрослого организма, а есть только "программа поведения", работающая на уровне индивидуальных клеток. Многоклеточный организм формируется в результате согласованного поведения делящихся клеток эмбриона. До сих пор сохранились виды организмов, представляющие собой фактически переходные стадии между одноклеточными и многоклеточными, у которых в ходе жизненного цикла индивидуальные клетки самоорганизуются в сложные многоклеточные структуры. О самоорганизации сложных структур в результате согласованного поведения индивидуальных клеток см. в заметках:
- Способность к сложному коллективному поведению может возникнуть благодаря единственной мутации
- Амёбы-мутанты не позволяют себя обманывать
- Зачем цианобактерии вьют из себя веревки
- Микробиологи утверждают: многоклеточность — сплошное жульничество
- «Чувство кворума»: принятие коллективных решений в макро- и микромире
Очень важно понять, что эволюционируют не взрослые организмы, а генетические программы их индивидуального развития (онтогенеза). В ходе эволюции меняются не сами морфологические признаки, а генетически обусловленные алгоритмы их формирования в онтогенезе. Данные эмбриологии свидетельствуют о том, что алгоритм развития каждого вида живых организмов является модификацией алгоритмов развития его предков. Генетическая программа онтогенеза многоклеточных животных, как ни странно, сама по себе намного проще (содержит меньше информации), чем получающийся на ее основе взрослый организм. Новая информация "самозарождается" в ходе онтогенеза (в этом суть процесса самоорганизации). Чтобы понять эволюцию многоклеточных, необходимо четко представлять себе основные принципы онтогенеза (в доходчивой форме они описаны здесь). Возможные (допустимые, "разрешенные") пути эволюционных преобразований определяются не столько строением взрослого организма, сколько устройством его онтогенеза.
Понимание процессов самоорганизации имеет ключевое значение для понимания эволюции. Все мы неоднократно наблюдали такой яркий пример самоорганизации, как образование поразительно красивых и сложных морозных узоров на стекле. При этом у нас на глазах из "простого" (из хаотического движения молекул водяного пара) рождается "сложное" — изысканные ледяные картины, достойные кисти лучших художников. Мы понимаем, что эти узоры рисует не дед Мороз, они образуются сами. Примерно таким же образом и программа развития организма закодирована в геноме и окружающей среде. Наследственная изменчивость и дифференциальное размножение — это просто еще один механизм самоорганизации, благодаря которому из первоначальных простейших существ сами собой с неизбежностью развиваются те самые "endless forms most beautiful and most wonderful" (бесчисленные прекрасные и удивительные формы), которые населяют нашу планету.
Индивидуальное развитие многоклеточных организмов далеко не всегда, но довольно часто повторяет ("рекапитулирует") отдельные этапы его эволюционной истории. Так получается потому, что мутации, меняющие ранние этапы развития, чаще оказываются вредными и реже — полезными, чем мутации, затрагивающие более поздние этапы. Чем раньше в ходе эволюции появился признак, тем больше вероятность, что какие-то другие жизненно важные признаки организма уже успели стать зависимыми от него, и поэтому он не может быть изменен без ущерба для целого.
Таким образом, эволюционная теория предсказывает, что в эмбриональном развитии иногда должны воспроизводиться этапы эволюционной истории, а ранние стадии развития зародышей должны быть в тенденции более похожими друг на друга, чем поздние. Эти предсказания хорошо подтверждаются фактами. Даже очень непохожие друг на друга животные проходят практически одинаковые ранние стадии развития: зигота (оплодотворенное яйцо), бластула, гаструла и др.

У всех позвоночных животных наблюдается значительное сходство зародышей на ранних стадиях развития: форма тела, зачатки жаберных дуг, хвост, один круг кровообращения и т. д. (закон зародышевого сходства Карла Максимовича Бэра). Однако по мере развития сходство между зародышами различных систематических групп постепенно стирается и начинают преобладать черты, свойственные их классам, семействам, родам, и, наконец, видам.
Эволюционные изменения могут касаться всех фаз онтогенеза, то есть могут приводить к изменениям не только зрелых организмов, но и эмбрионов, даже на первых этапах развития. Тем не менее, более ранние фазы развития должны отличаться большим консерватизмом, так как изменения на более ранних этапах приводят к масштабным сбоям в процессе дальнейшего развития. Поэтому сравнительное изучение эмбрионов разных видов является важнейшим источником сведений о степени эволюционного родства.
В 1837 году эмбриолог Карл Райхерт выяснил, из каких зародышевых структур развиваются квадратная и сочленовная кости в челюсти рептилий. У зародышей млекопитающих обнаружены те же структуры, но они развиваются в молоточек и наковальню среднего уха (см.: Н.Н. Иорданский. Эволюция жизни. Глава 3). На основании этих фактов свыше 30 лет назад была выдвинута гипотеза (Allin, 1975), согласно которой в эволюции среднего уха млекопитающих должна была быть промежуточная стадия. Эта гипотеза блестяще подтвердилась в 2007 году открытием раннемелового яноконодона (Yanoconodon allini, см.: Новая палеонтологическая находка проливает свет на раннюю эволюцию млекопитающих).
У эмбрионов млекопитающих на ранних стадиях есть зачатки жаберных дуг и жаберных мешков, превращающиеся не в жабры, а в евстахиевы трубы, среднее ухо, миндалины, паращитовидные железы и тимус. При этом сохраняется относительное расположение нервов и сосудов: именно поэтому возвратный гортанный нерв огибает аорту в груди и возвращается к гортани.


У эмбрионов многих змей и веретениц закладываются и затем рассасываются зачатки конечностей. У эмбрионов китообразных начинают расти задние ноги, развиваются кости, нервы и сосуды, после чего они полностью редуцируются. У зародышей усатых китов закладываются зачатки зубов, а у человеческих эмбрионов на 4–5 неделях развивается настоящий хвост из 10–12 позвонков, шесть из которых затем отмирают путем апоптоза. У сумчатых в эмбриогенезе временно образуется и рассасывается яичная скорлупа, а новорожденные бандикуты и коалы сохраняют рудиментарный яйцевой зуб.
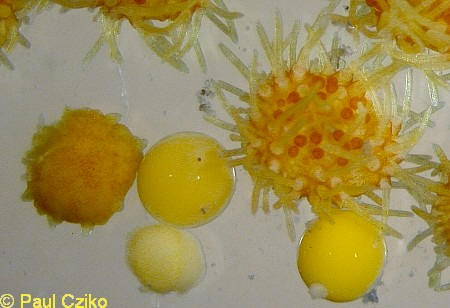
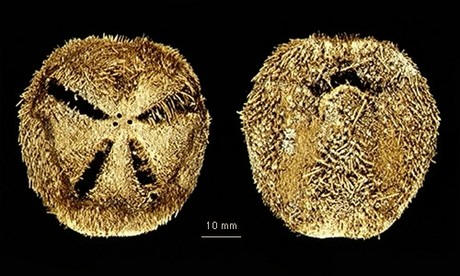
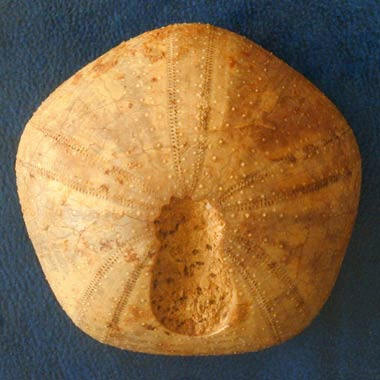
Дополнительный пример 1. Морские ежи
Подкласс неправильных ежей (Irregularia) произошел от правильных радиальных ежей (Regularia) в юре (см.: Ранние этапы эволюции неправильных морских ежей). При этом у всех современных неправильных ежей личинка сначала превращается в маленького радиально-симметричного ежика, и лишь затем приобретает двустороннюю симметрию.
Дополнительный пример 2. Камбалообразные рыбы
У взрослых камбал оба глаза на одной стороне, а череп асимметричен. Однако мальки камбал рождаются с абсолютно симметричной головой, и лишь в ходе роста один глаз переползает на другую сторону (см.: Ископаемые рыбы в очередной раз подтвердили правоту Дарвина).
2. Эво-дево: следы макроэволюции
Креационисты нередко признают образование новых видов, но решительно отрицают существование макроэволюции, то есть возникновения таксонов надвидового ранга. Каким же образом могут возникать глубокие различия в строении или поведении организмов? Для того, чтобы разгадать эту загадку, нам надо ответить на три вопроса:
- Как и почему может измениться план строения организмов?
- Способны ли организмы, имеющие необычный план строения, выживать и размножаться в природе?
- Действительно ли известные нам механизмы перестроек плана строения имеют отношение к происхождению надвидовых таксонов, т.е. к макроэволюционным событиям?
2.1. Гомеозис и не только
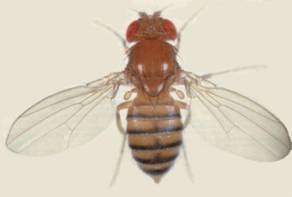
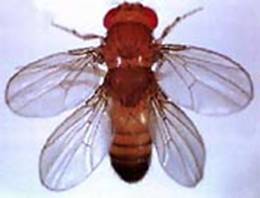
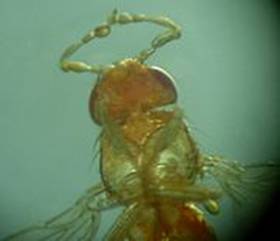
Генетикам давно известны мутации, вызывающие резкие перестройки плана строения организмов, такие как гомеозис (изменение идентичности органов) и гетеротопии (образование обычных органов в несвойственных для них местах). Впервые мутация bithorax (появление второй пары крыльев у дрозофилы) была описана К. Бриджесом в 1915 году.
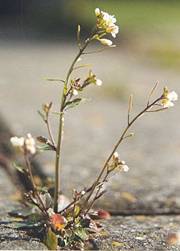
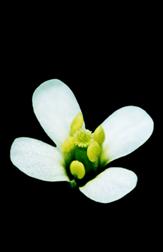
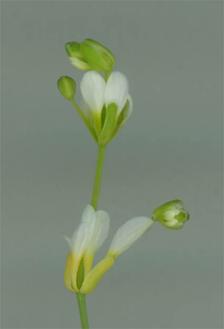
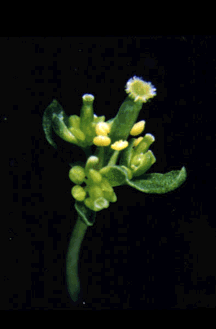
Слева направо: Резуховидка Таля (Arabidopsis thaliana) и её цветок; мутант по гену AGAMOUS (ветвящийся цветок без тычинок); мутант по гену APETALA1 (чашелистики превращены в листья).
Итак, мутации лишь одного гена могут вызвать резкие изменения в строении дрозофилы и арабидопсиса, а значит и других организмов. Морфологические перестройки могут быть обусловлены не только классическими мутациями, но и эпигенетическими механизмами регуляции экспрессии генов во времени и пространстве.
2.2. Безнадежны ли «обнадёживающие монстры»?
В 1940 году Рихард Гольдшмидт высказал гипотезу о том, что макроэволюция есть результат системных мутаций (макромутаций), и ввел в обиход образ «обнадёживающего монстра» (hopeful monster). Тем не менее в природе встречаются жизнеспособные популяции, состоящие из таких «монстров»:
Пример 1. Пелории у льнянки
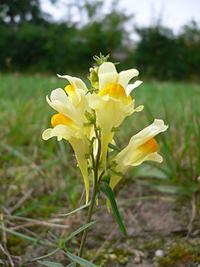
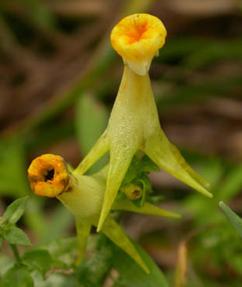
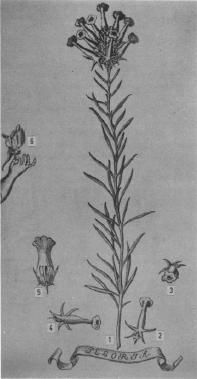
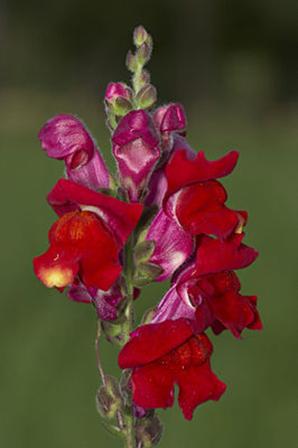
В 1742 году студент Карла Линнея Магнус Сёберг нашел близ Стокгольма льнянку с радиально-симметричными пятишпорцевыми цветками («пелория», по-гречески «монстр»). Линней посвятил ей диссертацию, впервые задумавшись об изменяемости видов. В 1999 г. группа ученых (Cubas et al., 1999) доказала, что пелория возникает из-за метилирования (эпигенетической блокировки) гена LCYC, гомолога гена CYCLOIDEA львиного зева.
Пример 2. Десятитычинковые цветки пастушьей сумки
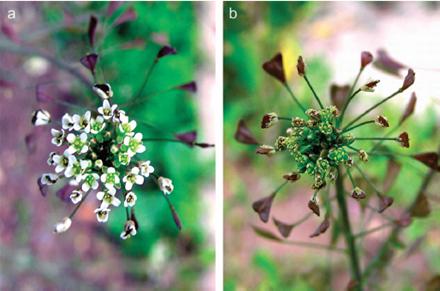
У пастушьей сумки (Capsella bursa-pastoris) описана природная форма, у которой все 4 лепестка превратились в тычинки (их стало 10 вместо 6). Безлепестные формы успешно живут в природных популяциях Германии и США, производя нормальное количество семян при самоопылении или привлекая жуков вместо пчел. Мутация связана с расширением зоны экспрессии гена AGAMOUS.
2.3. Монстры и макроэволюция
Заглянуть в прошлое и реконструировать эволюционные перестройки плана строения позволяют методы молекулярной филогенетики и генетики развития (эво-дево):
Пример 1. Двусторонняя симметрия цветков Iberis
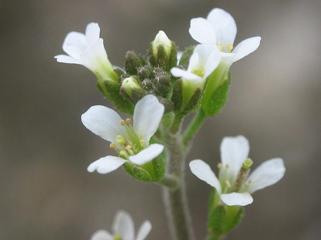
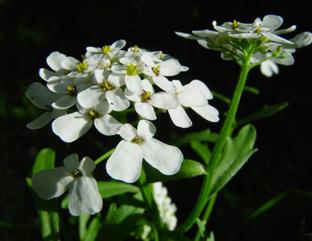
Крестоцветные имеют радиальные цветки, но у ибериса (Iberis) два нижних лепестка крупнее двух верхних. Оказалось, что за это отвечает ген IaTCP1 (гомолог гена TCP1 арабидопсиса и CYC львиного зева), время включения которого сдвинулось на более поздние стадии развития. Крупное морфологическое новшество рода Iberis возникло не «с чистого листа», а модификацией уже имевшегося регуляторного каскада.
Пример 2. Почему у орхидей такие разнообразные цветки?
Семейство орхидных (Orchidaceae) насчитывает около 30 000 видов. Для них характерна двусторонняя симметрия и сложная губа (t3), служащая посадочной площадкой для опылителей.
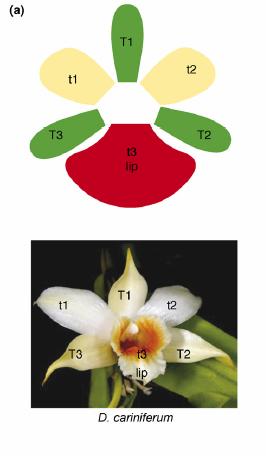
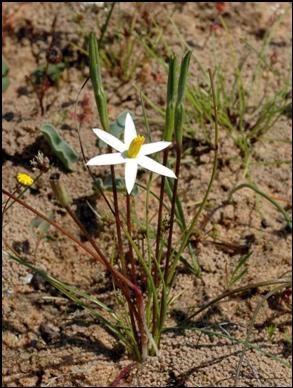
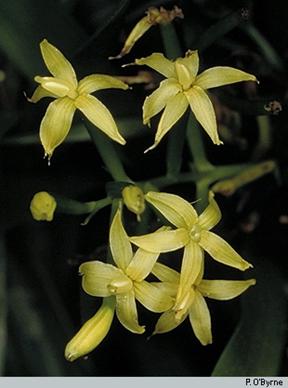
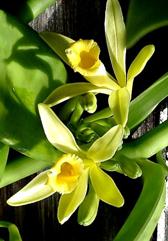
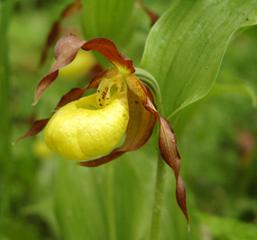
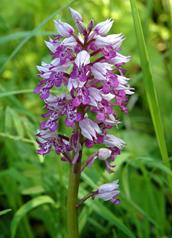
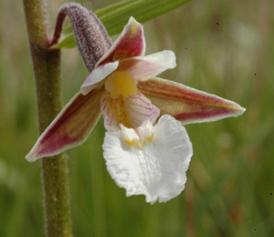
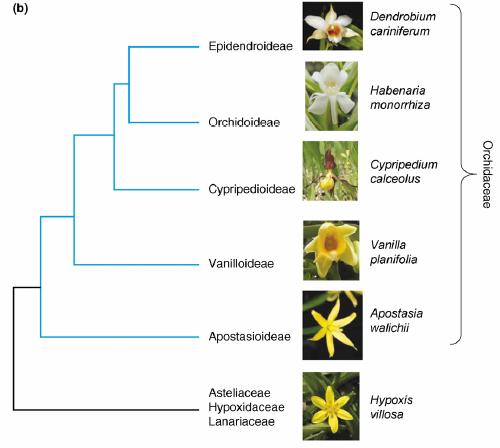
У большинства цветковых за околоцветник отвечают гены В-класса: по одному гену типа DEFICIENS (DEF) и GLOBOSA (GLO). У предков орхидей произошло два цикла удвоения генов DEF, давших четыре специализированных гена: гены 1 и 2 определяют развитие листочков околоцветника, ген 3 задает отличия внутреннего круга, а ген 4 формирует специализированную губу. Эта ключевая геномная дупликация предопределила эволюционный расцвет семейства орхидных.