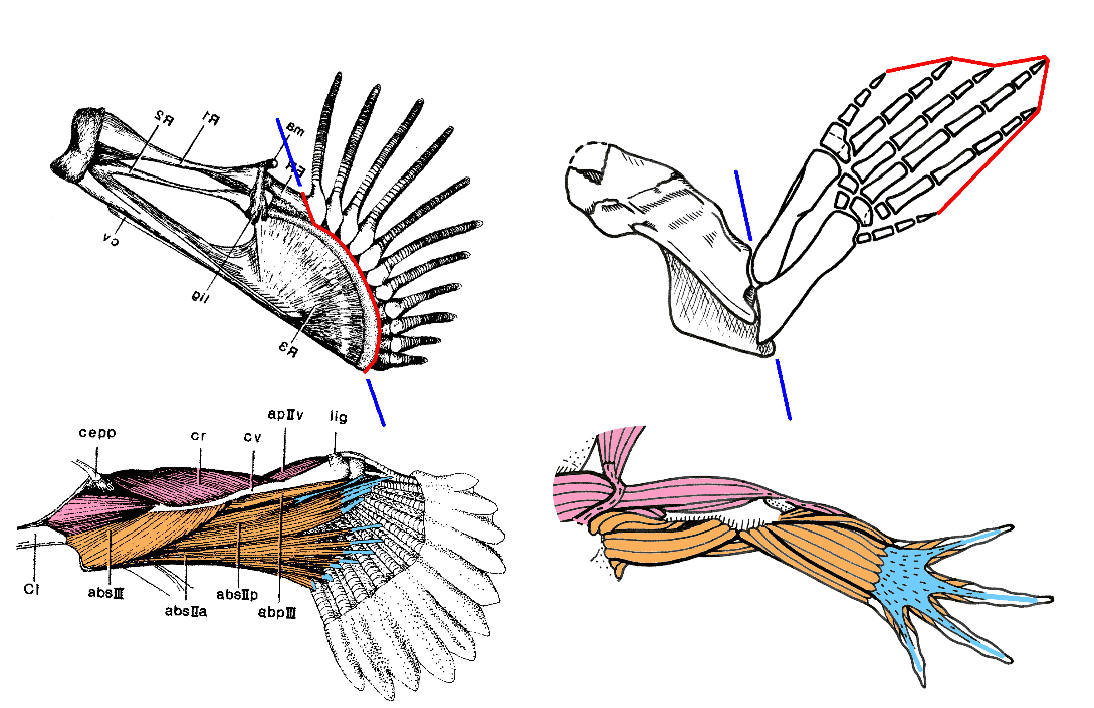


3. Палеонтологические доказательства
Ископаемая летопись
Как правило, останки растений и животных разлагаются и исчезают без следа. Но иногда биологические ткани замещаются минеральными веществами, и образуются окаменелости. О том, как и при каких обстоятельствах это происходит, и почему иногда в древних остатках живых организмов могут сохраняться даже отдельные органические молекулы и тонкие структуры, такие как клетки или кровеносные сосуды, подробно рассказано в статье одного из авторов данной публикации, палеонтолога А.Ю.Журавлева "Вечно неживые".
Обычно учёные получают в распоряжение окаменевшие кости или раковины, то есть твёрдые части, скелеты. Иногда находят отпечатки следов животных или следы их жизнедеятельности. Еще реже находят животное целиком — вмороженным в лёд в районах современной вечной мерзлоты, попавшим в смолу древних растений (янтарь) или в другую естественную смолу — асфальт (см.: изображения окаменелостей).


Изучением ископаемых останков занимается палеонтология. Как правило, осадочные породы залегают слоями, поэтому более глубокие слои рассказывают более старые истории (принцип суперпозиции). Этот принцип лег в основу стратиграфии — "науки о земных слоях". Данные стратиграфии позволяют определять относительный возраст окаменелостей, то есть выяснять, какие ископаемые организмы жили раньше, а какие позже. Любопытно, что автор принципа суперпозиции, датский ученый XVII века Николай Стенон (Нильс Стенсен) за свои заслуги перед церковью был в 1987 году беатифицирован (причислен к лику блаженных) римским папой Иоанном Павлом II. Возможно, это единственный случай, когда католический блаженный внес столь важный вклад в развитие эволюционизма.
Принцип суперпозиции Стенона и основанная на нем наука стратиграфия позволяют, сравнивая ископаемые формы из последовательных напластований, делать выводы об основных направлениях эволюции. Для оценки возраста окаменелостей используются многочисленные методы датировки, которые подразделяются на относительные (стратиграфические) и абсолютные (разнообразные радиометрические методы, а также люминесцентные, методы электронно-парамагнитного резонанса и др.) (см. А.Марков. Хронология далекого прошлого).
Надежность современных методов датировки земных слоев и содержащихся в них ископаемых доказывается, в частности, тем обстоятельством, что оценки возраста, полученные при помощи множества независимых методов, как правило, получаются сходными. Все эти методы быстро развиваются. Еще лет 20–30 назад довольно часто наблюдались значительные расхождения результатов, полученных разными методами. На этих расхождениях до сих пор любят спекулировать противники эволюции, но их сведения сильно устарели. По мере совершенствования используемых методов они становятся все более точными и дают все более сходные результаты. Поэтому, например, международная геохронологическая шкала образца 1980-х годов довольно заметно отличается по абсолютным датировкам от шкалы образца 2000-х годов (различия в некоторых датах, например, в дате начала кембрийского периода, могут достигать 5–7%), однако за последние 10 лет изменения такого рода практически перестали происходить. На сегодняшний день абсолютный возраст древних отложений во многих случаях удается определить с точностью до долей процента. О достоверности радиометрических методов и несостоятельности попыток антиэволюционистов их "опровергнуть" см.: Николай Борисов. Проставляем даты на геологической летописи, или Как физики геологам помогают; А.Марков. Хронология далекого прошлого.
При взгляде на палеонтологическую летопись бросается в глаза тот факт, что жизнь на Земле существенно менялась, вплоть до полной неузнаваемости. Чем глубже в прошлое мы смотрим, тем меньше видим общего с современной биосферой. Первые прокариоты (простейшие одноклеточные, не обладающие оформленным клеточным ядром) появляются приблизительно 3.5 млрд лет назад. Первые одноклеточные эукариоты появляются 1.75 млрд лет назад (подробнее см.: Происхождение эукариот). Еще через миллиард лет, немногим более 635 млн лет назад, в палеонтологической летописи появляются первые бесспорные многоклеточные животные — губки (см.: Животные появились свыше 635 миллионов лет назад).
Через несколько десятков млн лет мы находим первых червей и моллюсков, а еще через 15 млн лет — первых примитивных позвоночных, похожих на современных миног. Челюстноротые рыбы появляются 410 млн лет назад, насекомые — 400 млн лет назад, и еще 100 млн лет суша покрыта в основном папоротниками и населена насекомыми и земноводными. С 230 по 65 млн лет назад на Земле господствуют динозавры, самые распространенные растения — саговники и другие группы голосеменных. Первые цветковые растения появляются чуть более 100 млн лет назад. В целом чем ближе к современности, тем больше сходства имеют ископаемые флоры и фауны с современными. Наблюдаемая картина соответствует эволюционной теории и не имеет других научных объяснений.
«ГЕОЛОГИЯ ПОТОПА»
Антиэволюционисты, как правило, отрицают геохронологическую шкалу и утверждают, что практически все осадочные породы сформировались единовременно во время Всемирного Потопа. При этом погибшие организмы отсортировались таким образом, что в нижних слоях осадков оказались самые маленькие и простые организмы, в верхних — крупные и сложные. "Геология потопа" имеет целый ряд проверяемых следствий, ни одно из которых не подтверждается фактами. Вот несколько примеров таких неподтвержденных следствий:
- Слои осадочных пород должны располагаться всегда горизонтально (антиэволюционисты обычно отрицают тектонику и складчатость, из-за которых слои часто залегают не горизонтально);
- На дне океанов должны быть широко представлены самые нижние (докембрийские, палеозойские) осадочные слои (их там нет совсем, потому что дно океанов постоянно обновляется в результате тектонических процессов);
- Должно быть много районов, которые в течение всего Потопа находились под водой, и где поэтому должна была образоваться полная стратиграфическая колонна — все слои от архея до голоцена (таких полных геологических разрезов не существует, потому что ни в одной точке Земли не поддерживались благоприятные для осадконакопления условия непрерывно в течение всей земной истории);
- Не должно быть на большой высоте над уровнем моря стационарных комплексов окаменелостей, таких как ископаемые коралловые рифы; не должно быть высоких гор, сложенных в основном осадочными породами;
- Гидродинамическая "сортировка" ископаемых во время Потопа могла быть только статистической, но не абсолютной. Иными словами, мы должны были бы находить мало костей млекопитающих в докембрийских отложениях, но мы не находим их совсем, а этого "Геология потопа" объяснить не может.
Одна-единственная достоверная находка ископаемого кролика в докембрии опрокинула бы современную эволюционную теорию, и научный прогноз состоит в том, что такая находка никогда не будет сделана.
«ЭКОЛОГИЧЕСКАЯ СОРТИРОВКА»
Еще один хитроумный зигзаг антиэволюционной мысли породил "теорию", согласно которой "сортировка" ископаемых во время Потопа объясняется тем, что разные животные с разной эффективностью "спасались" от бедствия: низшие формы погибли первыми, тогда как высшие продержались дольше — например, потому, что были способны убежать в горы. Что касается растений, не способных куда-либо убежать, то их закономерное распределение в земных слоях противники эволюции объясняют, видимо, тем, что низшие растения росли ниже, а высшие — выше над уровнем моря (картина, имеющая мало общего с реальностью).
Эта "теория" еще смехотворнее и беспомощнее, чем "модель гидродинамической сортировки". Она рассчитана исключительно на людей, абсолютно не знакомых с реальными данными стратиграфии и палеонтологии. Например, как объяснить с точки зрения этой теории, что и пыльца и споры наземных растений в осадочных породах тоже распределяются в соответствии с общим правилом? В докембрийских и кембрийских отложениях вообще нет пыльцы и спор наземных растений. Первые споры наземных мохообразных появляются в отложениях середины ордовикского периода (около 465 млн лет назад). Споры первых сосудистых растений известны с конца ордовика (450–444 млн лет назад) (см.: Палеонтологи уточнили время и место появления сосудистых растений). И так далее, вплоть до появления пыльцы цветковых растений в меловом периоде.
Прекрасно известно, что пыльца и споры наземных растений далеко разносятся ветром, тонут в морях и поэтому повсеместно присутствуют в морских отложениях, образующихся в наши дни. Так же обстояло дело и в прошлом. Поэтому спорово-пыльцевой анализ — один из надежнейших методов биостратиграфии. "Теория экологической сортировки" не в состоянии объяснить стратиграфическое распространение пыльцы и спор, окаменевших следов (ихнофоссилий), морского планктона и фаун древних озерных отложений.
КАТАСТРОФИЗМ
На ранних этапах развития исторической геологии и палеонтологии, когда было выделено еще очень небольшое число геохронологических интервалов, наблюдаемую картину пытались объяснить при помощи теории катастроф (Бог несколько раз уничтожал свое Творение глобальными катастрофами, а потом творил заново). Но сегодня глобальные геохронологические интервалы, каждый со своим уникальным комплексом окаменелостей, уже исчисляются сотнями, а преобразования животного и растительного мира в последовательностях слоев явно выглядят во многих случаях вполне постепенными. Даже самые ярые антиэволюционисты не могут вообразить, зачем могло понадобиться Богу сотни раз уничтожать жизнь, а потом каждый раз воссоздавать ее лишь в слегка измененном виде. Развитие исторической геологии и палеонтологии, таким образом, опровергло катастрофизм. Тем не менее в истории Земли действительно были периоды массовых вымираний, сыгравшие значительную роль в эволюции биосферы (см.: Экологические кризисы, их причины и эволюционная роль).
Биостратиграфия
Как и во многих других случаях, для того, чтобы получить верное представление о степени убедительности палеонтологических доказательств эволюции, необходимо прежде всего осознать масштаб происходящего, всю громадность объема накопленных данных. Для начала рассмотрим современную геохронологическую шкалу — результат многолетних трудов многотысячной международной армии геологов (см. также: Стратиграфия и геохронология).
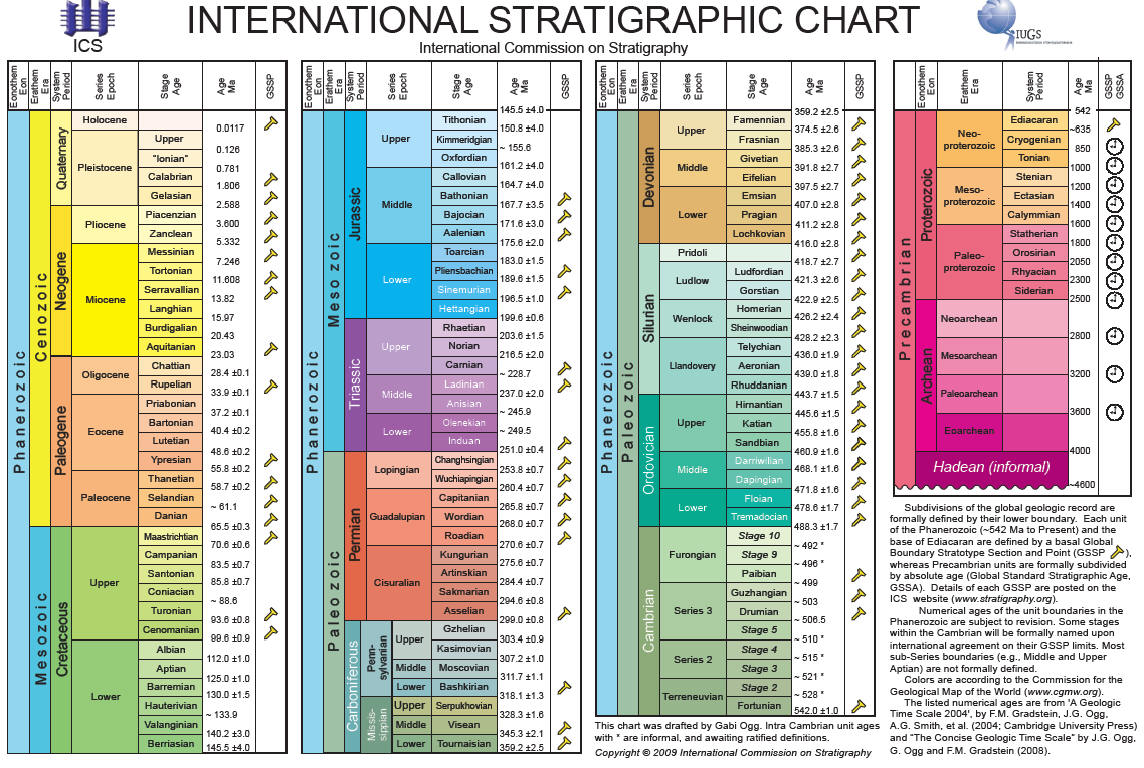
На этой шкале выделено 115 временных (геохронологических) интервалов. Это "международные" интервалы, то есть такие, которые удается опознать по всему миру. В каждом регионе существуют еще и местные (региональные) стратиграфические шкалы, которые, как правило, намного более детальны. Корреляция слоев в большинстве случаев осуществляется по комплексам окаменелостей. Для межрегиональной корреляции удобнее всего использовать такие ископаемые организмы, которые: 1) были распространены всесветно ("космополиты"), 2) были достаточно многочисленными и неплохо сохраняющимися, 3) существовали недолго. Ископаемые организмы, удовлетворяющие этим условиям, называют "руководящими ископаемыми", и они играют ключевую роль в стратиграфии.
Креационисты иногда заявляют, что они отрицают из всех наук только одну-единственную — эволюционную биологию, а со всеми остальными науками у них полное согласие. Неправда. Отрицая геохронологическую шкалу, креационисты идут сразу против трех наук: биологии, геологии и физики.
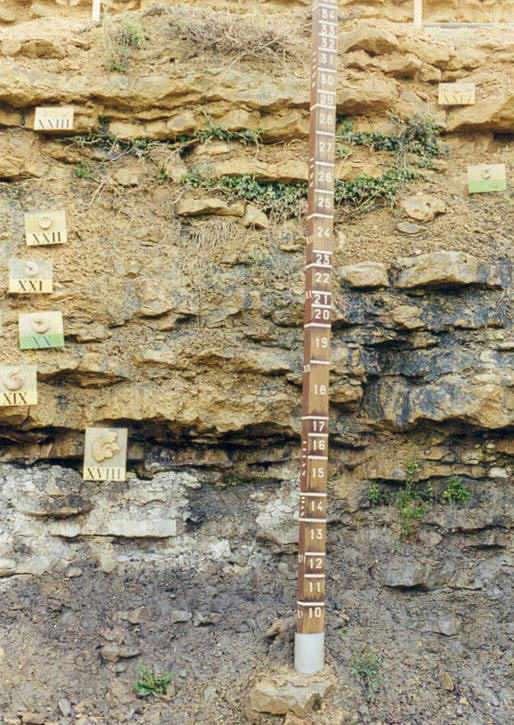
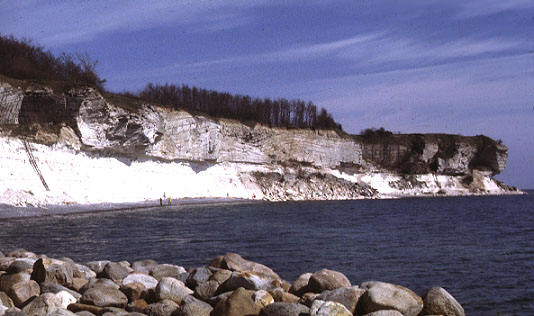
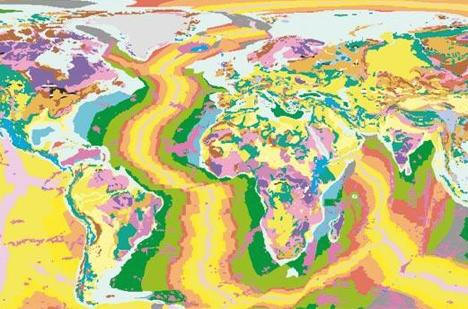
Биостратиграфия — наука весьма практическая, она играет ключевую роль в поиске полезных ископаемых. Если бы она была основана на ложных посылках, как утверждают антиэволюционисты, не стали бы нефтяные компании платить большие деньги биостратиграфам, которых они всегда нанимают для разведки новых месторождений.
По имеющимся оценкам, более 99% видов живых существ, когда-либо существовавших на Земле, — это вымершие виды. На сегодняшний день палеонтологи описали примерно 250 000 ископаемых видов, около 60 000 родов и примерно 7 000 семейств, каждый из которых имеет строго определенное стратиграфическое распространение. В каждой группе ископаемых прослеживаются превосходные эволюционные ряды.
Профессионально заниматься биостратиграфией и палеонтологией и при этом быть антиэволюционистом — немыслимо. Это все равно что быть хирургом, полагая, что в артериях течет воздух.
Почему же Жорж Кювье не признавал эволюцию? Ответ прост: в те времена палеонтология находилась в зародышевом состоянии. Если бы современные ученые знали только то, что было доступно Кювье, они, вероятно, тоже смогли бы обойтись без эволюционного учения. Но если бы Кювье жил и работал сегодня, он непременно был бы эволюционистом.
Переходные формы
Общеизвестное доказательство эволюции — наличие так называемых промежуточных форм (переходных форм), то есть организмов, сочетающих в себе характерные признаки разных видов или таксонов более высокого ранга. На основе филогенетического дерева теория эволюции предсказывает, какие промежуточные формы реально существовали (и поэтому могут быть найдены), а какие — нет. Например, зная строение рептилий и птиц, мы прогнозируем возможность найти животных, подобных рептилиям, но с перьями, или птиц с зубами и длинными хвостами. При этом мы предсказываем, что никогда не будут найдены ископаемые млекопитающие с перьями.
Антиэволюционисты "требуют", чтобы переходная форма между А и Б была непременно промежуточной по всем без исключения признакам, объявляя формы с разной скоростью эволюции признаков "просто мозаичными". Эволюционная теория как раз и предсказывает, что большинство переходных форм должны быть мозаичными, поскольку разные признаки эволюционируют с разной скоростью.
Другой неправомерный довод — требование предъявить "крокоутку". Но утки не происходили от крокодилов! И те, и другие произошли от общего предка-архозавра пермского периода. Общий предок не обязан походить на химеру из двух современных потомков.
Требование доказать, что найденная форма — прямой предок: это все равно что требовать доказательств, что череп Омо I принадлежал самой Митохондриальной Еве, а не ее сестре. В палеонтологии находят близких родственников прямого предка, требовать большего от неполной летописи ненаучно.
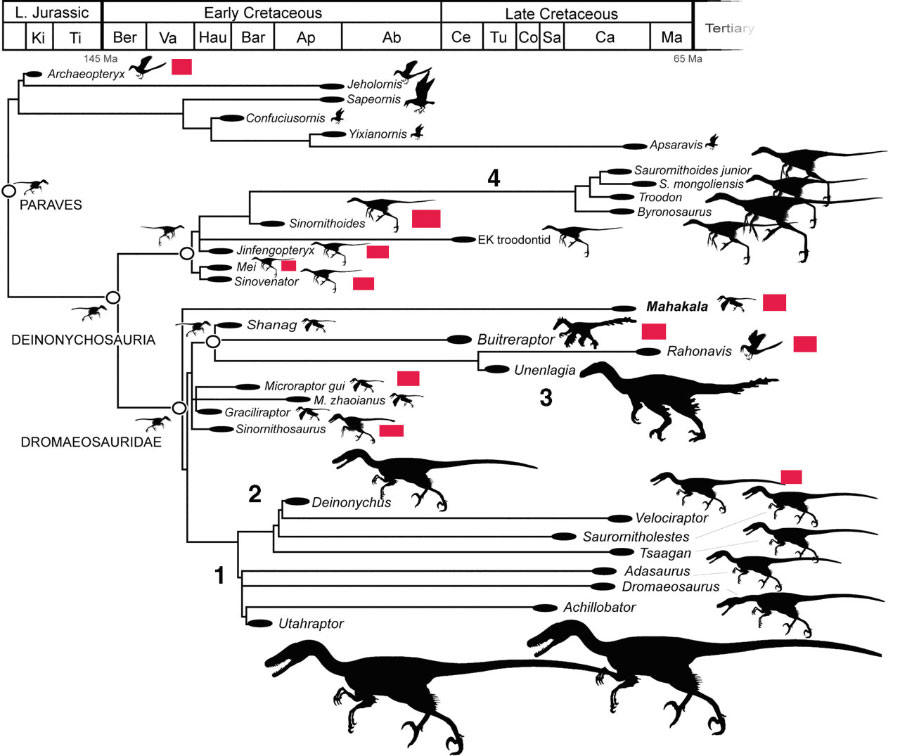
Превращение динозавров в птиц ("орнитизация динозавров-теропод")
Серия блестящих палеонтологических находок пролила свет на детали превращения динозавров в птиц. Многие хищные динозавры-тероподы эволюционировали "в птичью сторону":
- Перья сначала служили для красоты, а для полета пригодились позже. В 2008 г. найден пушистый нелетающий динозавр Epidexipteryx с четырьмя длинными перьями на хвосте для брачных демонстраций. Перья сначала возникли для термоизоляции, затем для демонстраций, и лишь потом — для полета.
- Малый размер птичьих геномов — наследие эпохи динозавров. Малый размер генома сформировался у теропод задолго до полета.
- Предки птиц, возможно, были четырехкрылыми. Находка юрского Anchiornis huxleyi показала наличие контурных перьев на всех четырех конечностях.
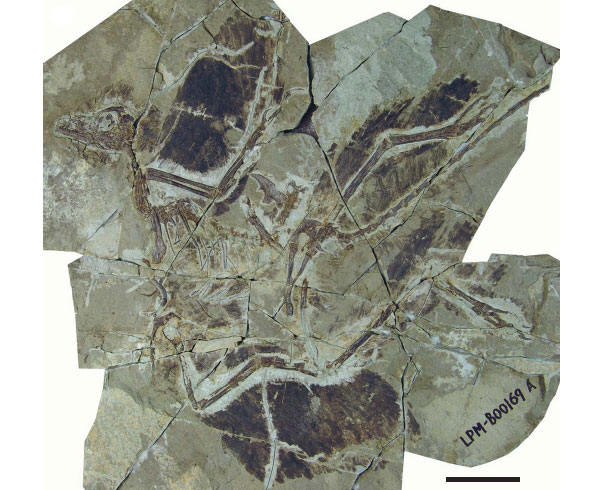
- Как велоцираптор разучился летать. Бугорки на локтевой кости велоцираптора подтвердили наличие перьев даже у крупных нелетающих форм.
- В Китае нашли кости гигантского птицеподобного динозавра (полуторатонный Gigantoraptor erlianensis).
- В Китае нашли мохнатого динозавра (протоперья у гетеродонтозаврид).
Другие переходные формы между крупными таксонами
Известно множество других переходных форм: от беспозвоночных к рыбам, от рыб к четвероногим, от земноводных к рептилиям, от рептилий к млекопитающим (см. List of transitional fossils):
- Эволюция среднего уха млекопитающих (хрящевая связь слуховых косточек с челюстью у мезозойских форм).
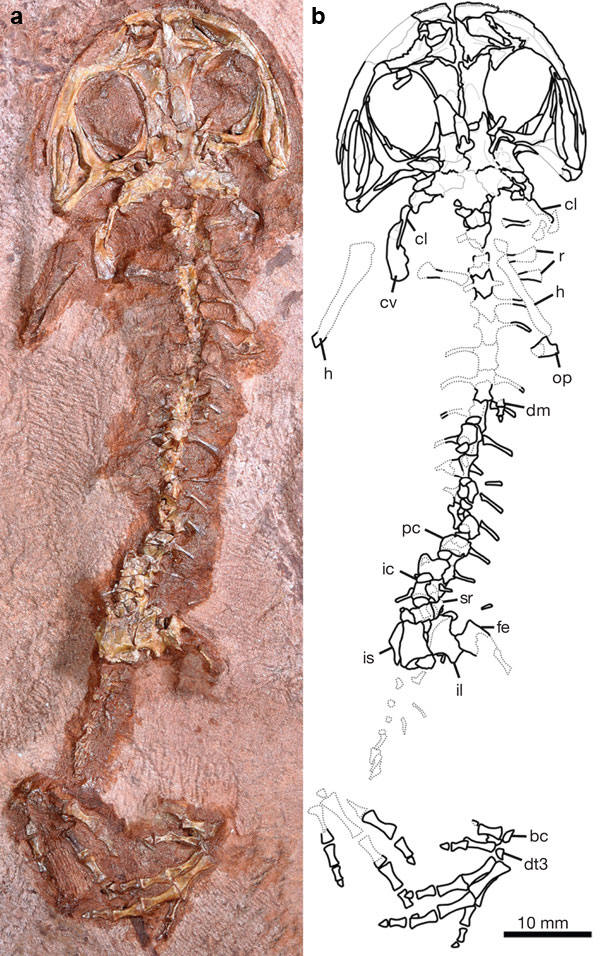
- Палеонтологи выяснили родословную лягушек и саламандр. В перми Техаса найден Gerobatrachus — мозаичное связующее звено между темноспондилами и бесхвостыми/хвостатыми амфибиями.
- Ископаемые рыбы подтвердили правоту Дарвина (переходные формы камбал с асимметричным черепом).
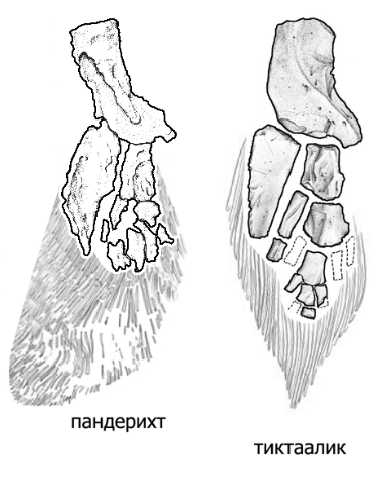
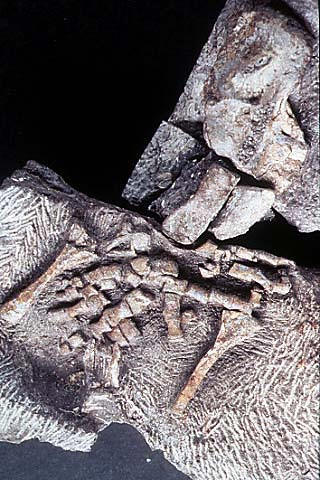
- Как рыбы научились ходить (Тиктаалик).
- Вентастега — между Тиктааликом и Акантостегой.
- Звено между членистоногими и аномалокарисами.
- Животное, близкое к общим предкам моллюсков и кольчатых червей.

Эволюция человека
См. также: Обзор достижений палеоантропологии и Антропогенез.
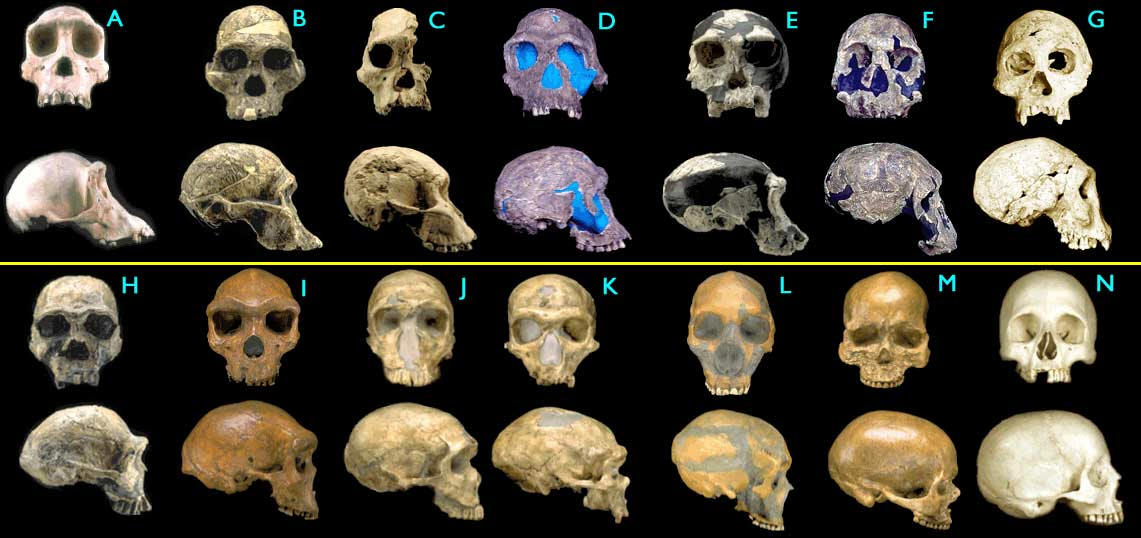
- (A) Pan troglodytes, шимпанзе, современный
- (B, C) Australopithecus africanus (STS 5 и STS 71), 2.6–2.5 млн лет
- (D, E) Homo habilis (KNM-ER 1813 и OH24), 1.9–1.8 млн лет
- (F) Homo rudolfensis (KNM-ER 1470), 1.8 млн лет
- (G) Homo erectus / georgicus (Dmanisi D2700), 1.75 млн лет
- (H) Homo ergaster (KNM-ER 3733), 1.75 млн лет
- (I) Homo heidelbergensis (Broken Hill), 300–125 тыс. лет
- (J, K, L) Homo neanderthalensis (La Ferrassie, La Chapelle, Le Moustier), 70–45 тыс. лет
- (M, N) Homo sapiens (Кроманьонец I и современный человек)
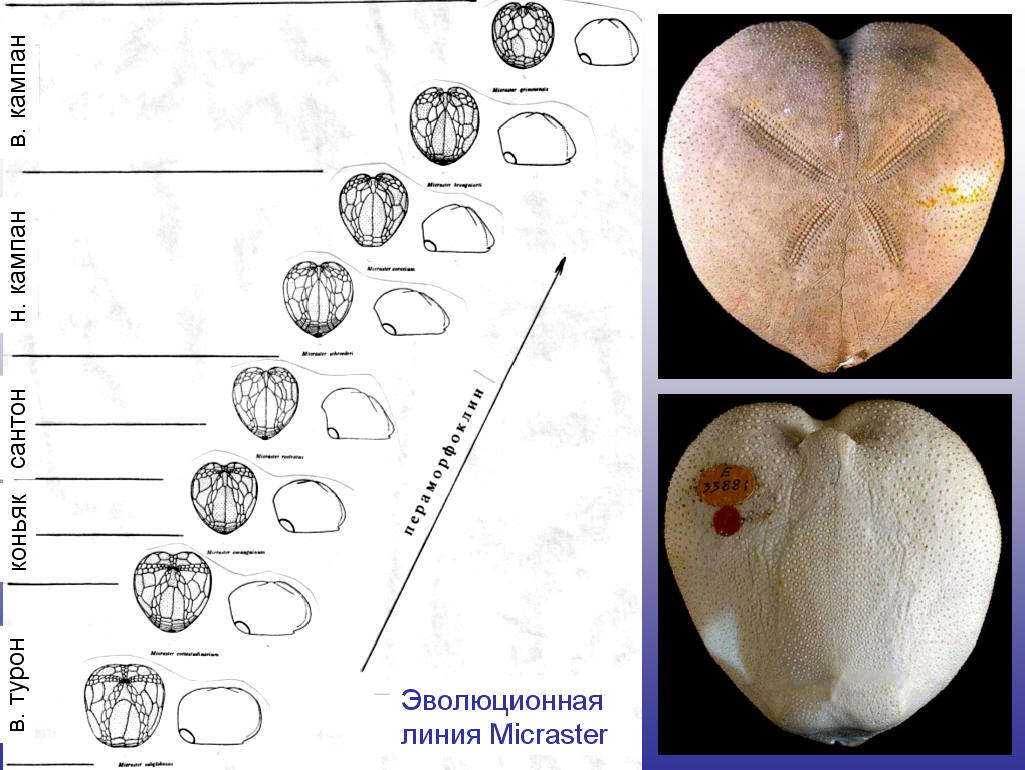
Разве соседние черепа гоминид на этом рисунке отличаются друг от друга сильнее, чем соседние панцири морских ежей? В случае с ежами креационисты отмахиваются: "ерунда, микроэволюция!". А при взгляде на черепа гоминид заявляют: "все это подделки, либо просто обезьяны, либо просто люди". Палеонтологическая история гоминид изучена детальнее большинства других групп животных.
В ходе эволюции гоминид сначала развилось прямохождение (австралопитеки и ардипитеки обладали объемом мозга около 400 см³, как у шимпанзе), и только значительно позже начался бурный рост объёма мозга: H. habilis (500–640 см³), H. ergaster / erectus (700–1100 см³), H. heidelbergensis (1100–1400 см³), неандертальцы (1200–1900 см³) и H. sapiens (1000–1850 см³).
Эволюция лошади

Ряд лошадиных охватывает более 12 родов за 54 миллиона лет: от лисоподобного четверопалого Hyracotherium к степным крупным животным с редукцией боковых пальцев, удлинением коронки коренных зубов для перетирания жестких трав открытых пространств.
"Микро" и "макро" (Выход рыб на сушу)
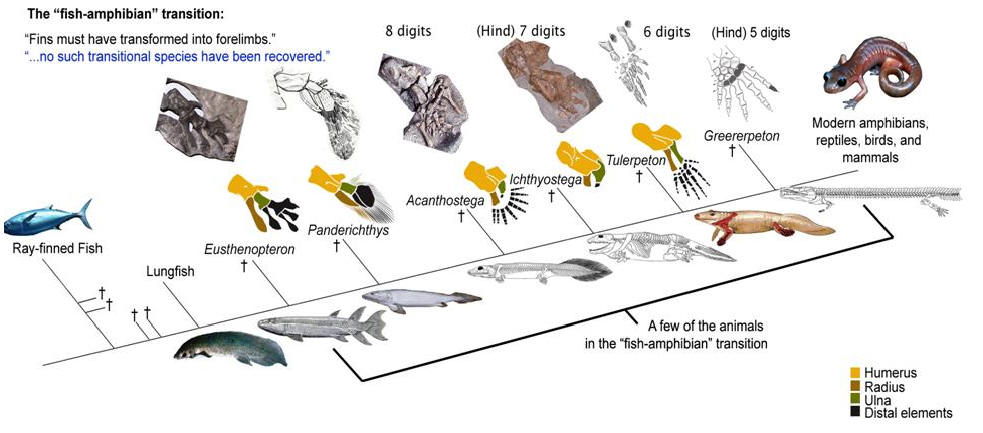
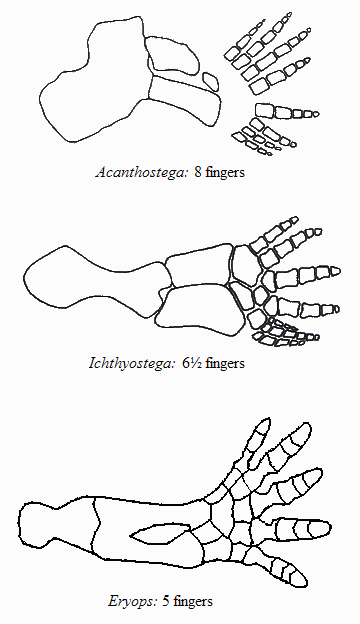
Биологи сходятся во мнении, что макроэволюция — это суммарный результат множества последовательных микроэволюционных шагов. Переход от девонских лопастеперых рыб к первым тетраподам занял около 20–25 млн лет (385–360 млн лет назад): Eusthenopteron → Panderichthys → Tiktaalik → Acanthostega → Ichthyostega → Tulerpeton.
Современные аналоги: илистые прыгуны и удильщики
Илистый прыгун демонстрирует независимое освоение суши современной рыбой: дыхание воздухом через сосуды ротовой полости, турнирные бои на берегу и передвижение на плавниках.